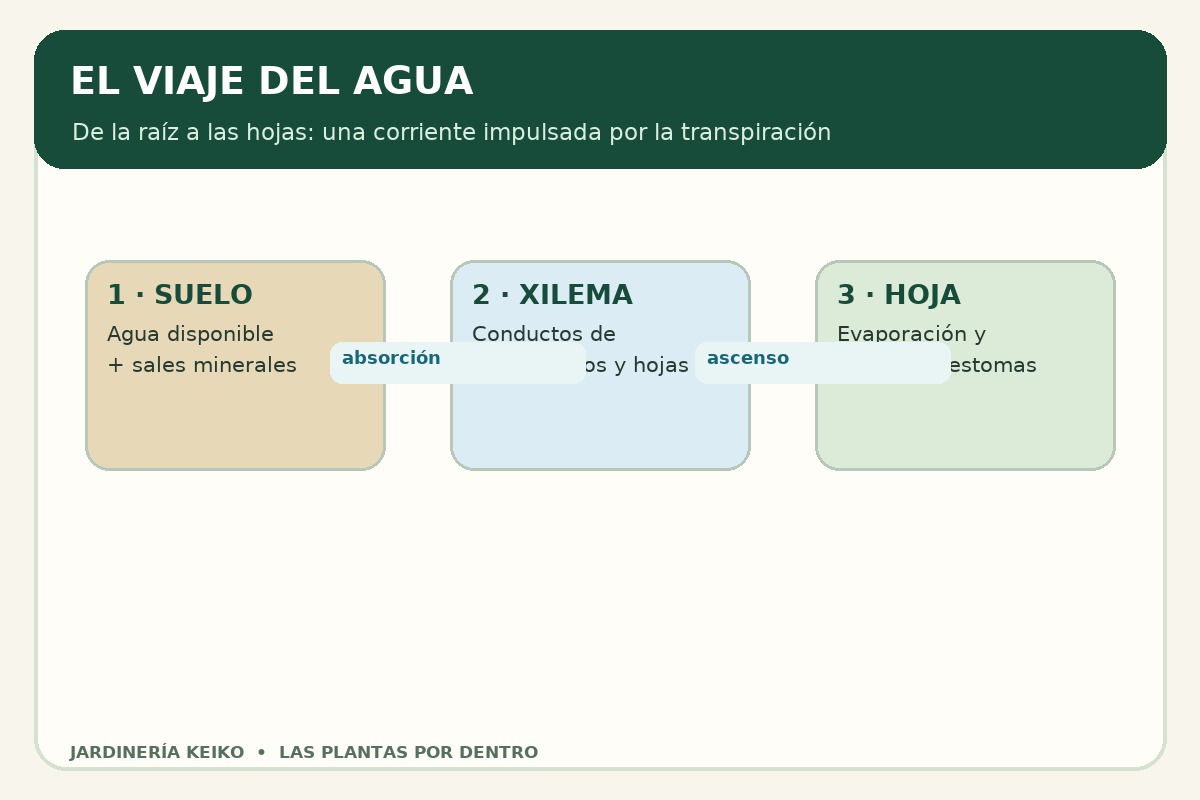
El agua que una planta absorbe no se queda quieta en las raíces. Una parte se incorpora a sus tejidos y participa en innumerables procesos; otra asciende por el tallo hasta las hojas y finalmente vuelve a la atmósfera en forma de vapor. Esta circulación conecta el suelo con el aire y hace posible que la planta mantenga sus células hidratadas, refrigere sus hojas y reciba muchos de los minerales que necesita. No existe una bomba central que empuje sin pausa toda el agua hacia arriba: el movimiento surge de diferencias de energía entre suelo, planta y atmósfera, y está estrechamente ligado a la evaporación foliar.
En este capítulo seguiremos esa ruta desde la zona húmeda del suelo hasta los estomas. Veremos por qué una raíz fina puede absorber, cómo el xilema conduce agua, qué significa que la transpiración “tire” de una columna líquida y qué señales observa el jardinero cuando la disponibilidad de agua no acompaña a la demanda ambiental.
1. La entrada comienza en el suelo
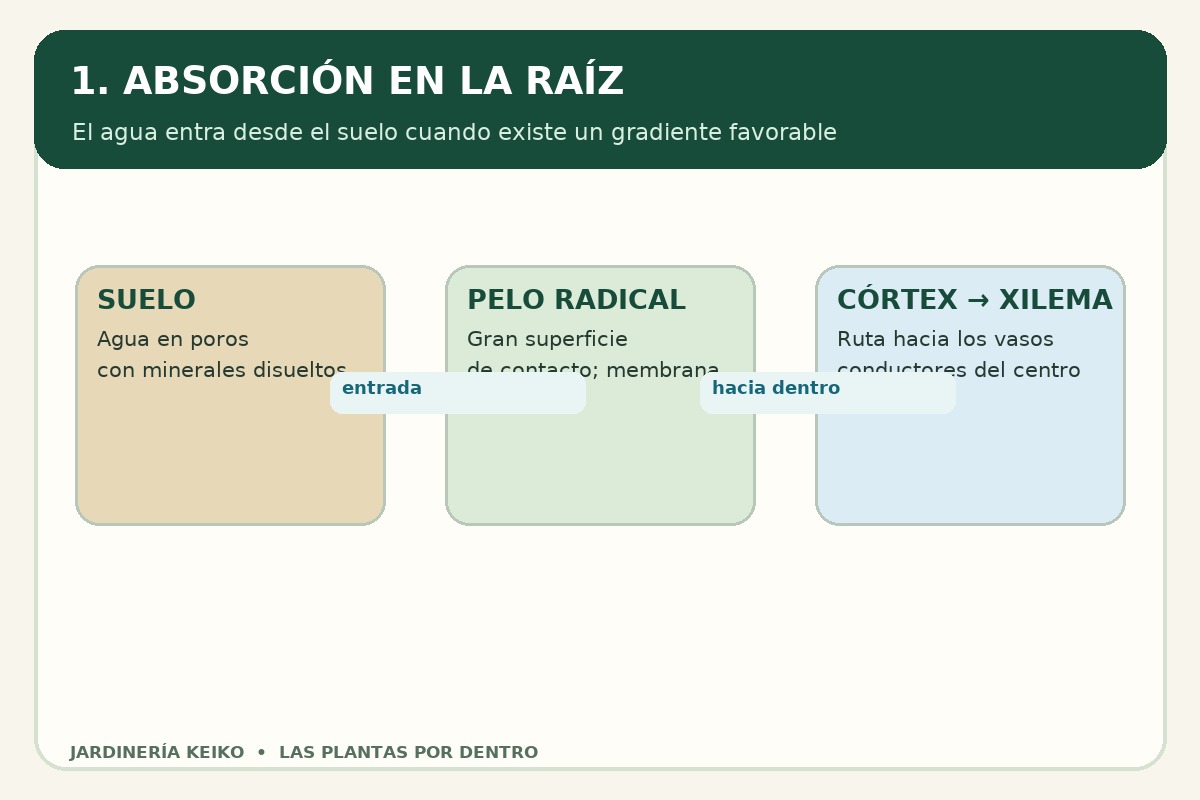
Las raíces exploran el suelo con extremos en crecimiento y abundantes raíces laterales. Cerca de las puntas, los pelos radicales son prolongaciones microscópicas de células epidérmicas. Multiplican enormemente la superficie de contacto con las películas de agua que recubren las partículas del suelo. No son tubitos que succionan por sí solos: el agua se desplaza a través de membranas celulares cuando las condiciones energéticas lo favorecen. La concentración de solutos dentro de las células, el estado de hidratación y el potencial hídrico del suelo contribuyen a determinar el sentido del movimiento.
El potencial hídrico expresa, de forma simplificada, la energía disponible del agua. El agua se mueve espontáneamente desde un potencial hídrico más alto —menos negativo— hacia otro más bajo —más negativo—. El suelo húmedo suele tener un potencial menos negativo que las células radicales, de modo que puede haber entrada. Si el suelo se seca, el agua queda retenida con más fuerza en sus poros; si además hay muchas sales, el potencial osmótico se hace más negativo. En ambos casos a la raíz le cuesta más obtener agua, aunque el suelo aún parezca algo húmedo.
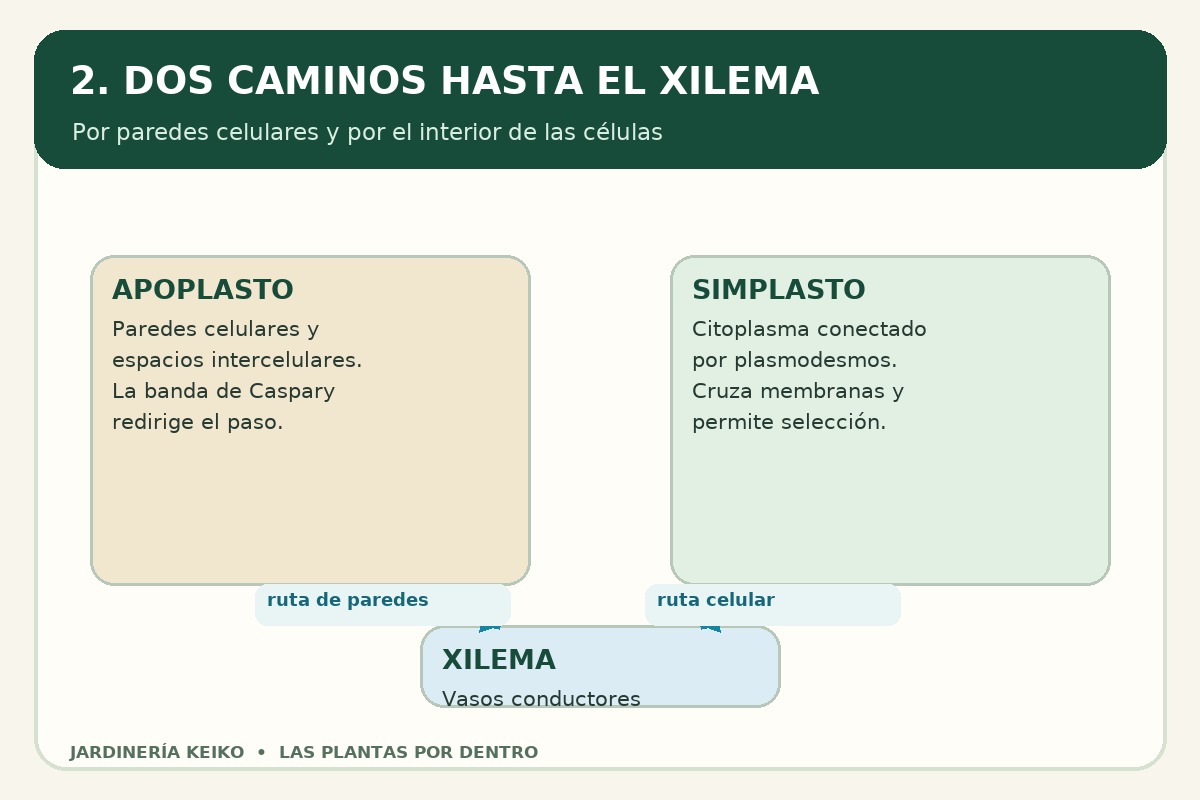
Una vez dentro de la raíz, el agua puede avanzar por el apoplasto, siguiendo paredes celulares y espacios entre células, o por el simplasto, pasando por el citoplasma conectado mediante plasmodesmos. En la endodermis, la banda de Caspary interrumpe el paso libre por las paredes y obliga a cruzar una membrana. Este control selectivo ayuda a regular qué sustancias entran al cilindro central y al sistema conductor; no es un filtro perfecto, pero sí una frontera fisiológica importante antes de llegar al xilema.
2. El xilema conduce la savia bruta
El xilema es el tejido vascular especializado en conducir agua y minerales disueltos desde las raíces hacia los órganos aéreos. Sus elementos conductores maduros —tráqueas en muchas plantas y traqueidas en todas las plantas vasculares— son células alargadas que, al madurar, pierden su contenido vivo y forman conductos con paredes reforzadas. La lignina ayuda a resistir las fuerzas mecánicas y la tensión que aparece cuando el agua asciende. Los vasos están conectados en una red ramificada: la corriente puede pasar de raíces a tallos, ramas y nervaduras de las hojas.
Se suele llamar savia bruta al agua con iones minerales que circula por el xilema. No significa que todos los minerales vayan simplemente “disueltos y empujados” en cantidades iguales: las raíces seleccionan y regulan la absorción de nutrientes, y cada especie y cada ion tienen dinámicas propias. Aun así, la transpiración genera un flujo masivo que contribuye al transporte de muchos elementos minerales hacia las partes en crecimiento. Las sales disueltas también modifican el potencial hídrico y afectan el equilibrio de agua de los tejidos.
3. Cohesión, tensión y el tirón de la transpiración
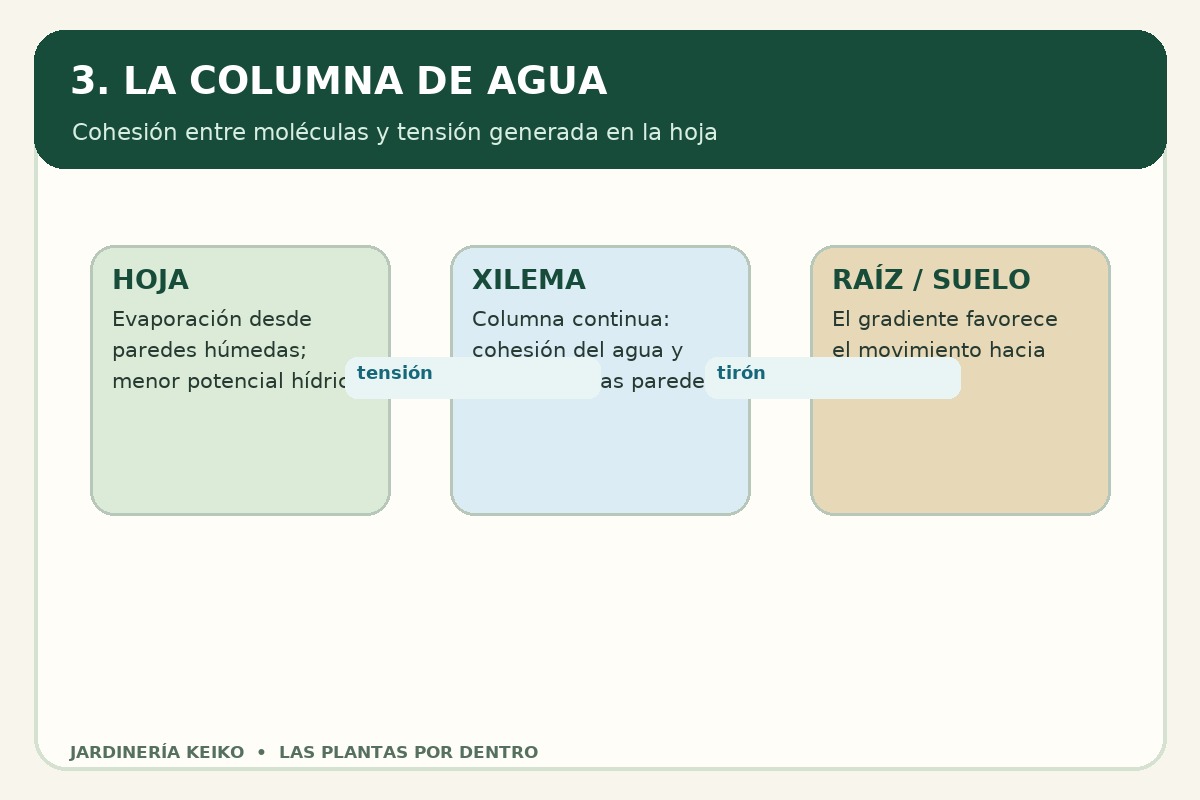
En una hoja, el agua se evapora de las paredes húmedas de las células del mesófilo hacia los espacios de aire internos. Desde allí, el vapor suele difundirse al exterior a través de los estomas. Al perder moléculas de agua, las superficies líquidas restantes se curvan en poros microscópicos de las paredes celulares; esto reduce su potencial y genera tensión. Esa tensión se transmite a la columna de agua del xilema y tiende a elevarla desde abajo. Es la explicación central de la teoría cohesión-tensión.
Las moléculas de agua se mantienen unidas por cohesión, en buena medida debido a los enlaces de hidrógeno. También interactúan con las paredes del xilema, un fenómeno llamado adhesión. Cohesión ayuda a conservar una columna continua y adhesión contribuye a que el agua se mantenga en contacto con las paredes. La evaporación foliar crea el gradiente de presión que tira de esa columna; la raíz puede aportar presión en ciertas circunstancias, por ejemplo cuando la transpiración es baja y hay agua abundante, pero normalmente no es una bomba capaz de explicar por sí sola el ascenso en árboles altos.
El gradiente puede describirse desde el suelo, pasando por raíz, xilema y hoja, hasta la atmósfera. En general, el potencial hídrico se hace progresivamente más negativo en esa dirección, especialmente cuando el aire está seco. La atmósfera puede tener un potencial extremadamente bajo, por lo que el vapor que se difunde hacia ella mantiene la cadena de movimiento. La planta no “aspira aire” por las raíces: es la pérdida de agua en la superficie foliar la que, a través de la continuidad hidráulica, está acoplada al ascenso del líquido.
4. Estomas: una regulación con compromisos
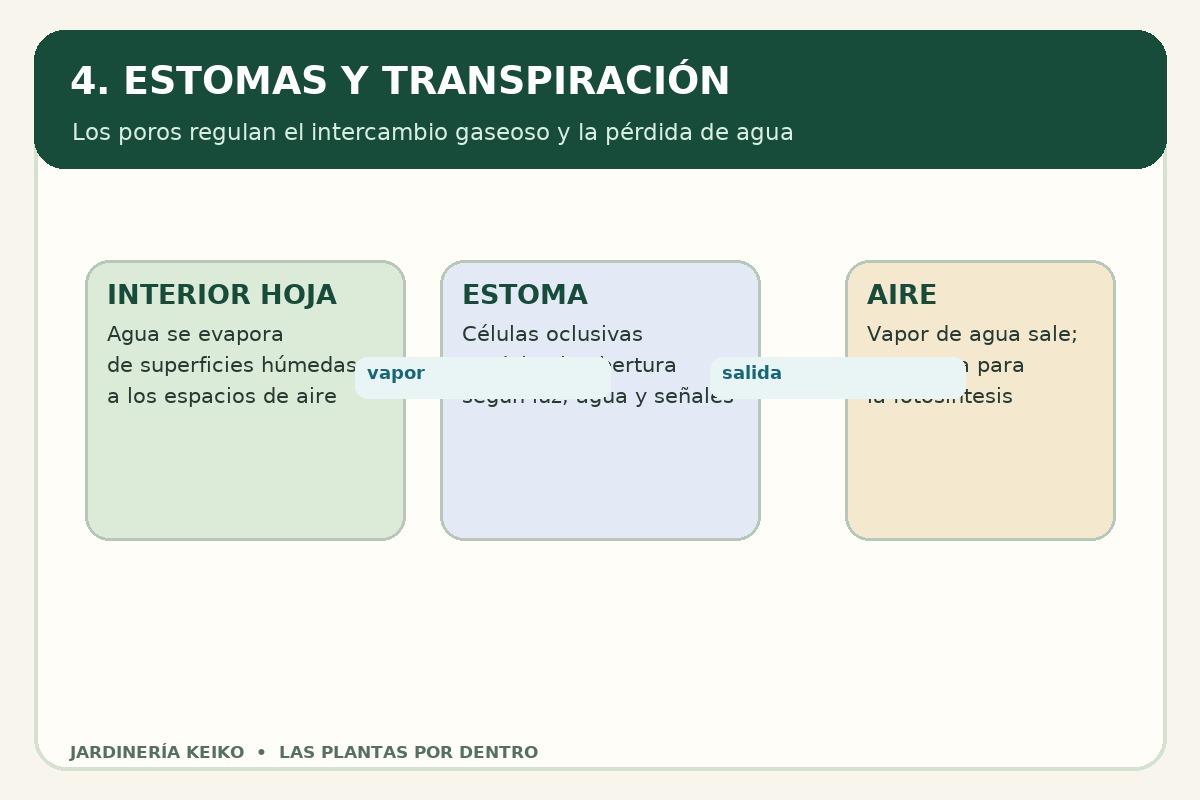
Los estomas son poros delimitados por células oclusivas. Cuando estas células cambian su turgencia, el poro se abre o se cierra. La apertura permite que entre dióxido de carbono necesario para la fotosíntesis, pero también facilita la salida de vapor de agua. La planta regula esa puerta de acuerdo con luz, concentración interna de CO₂, humedad ambiental, estado hídrico y señales hormonales, entre otros factores. El ácido abscísico producido o movilizado durante la sequía puede contribuir al cierre estomático.
Cerrar los estomas reduce la pérdida de agua, pero también limita la entrada de CO₂ y puede disminuir la fotosíntesis y el crecimiento. Abrirlos favorece el intercambio gaseoso, aunque en aire caliente y seco la pérdida de agua puede acelerarse. Por eso no hay una apertura “buena” universal: la planta equilibra adquisición de carbono y conservación de agua según las condiciones. La densidad y distribución de estomas, el grosor de la cutícula, la orientación de las hojas y otras adaptaciones modifican el balance entre especies.
5. El ambiente cambia la demanda
La temperatura alta suele acelerar la evaporación; una humedad relativa baja aumenta la diferencia entre el aire húmedo dentro de la hoja y el aire exterior. El viento puede retirar la capa de aire quieto que rodea la superficie foliar y aumentar la pérdida, aunque un viento muy intenso también puede inducir respuestas de cierre. La radiación aporta energía, y la disponibilidad de agua en el suelo limita cuánto puede reponer la raíz. La hora del día, la estación, la exposición, el tamaño de la copa y el tipo de sustrato se combinan; por eso dos plantas próximas pueden mostrar demandas distintas.
En una maceta pequeña, el volumen de sustrato es limitado y puede secarse con rapidez bajo sol, calor y viento. En suelo profundo, las raíces de una planta establecida pueden explorar un volumen mayor, aunque una capa compactada o un drenaje deficiente reduzcan la zona funcional. El encharcamiento no es lo contrario de la sequía fisiológica: al faltar oxígeno, las raíces dañadas respiran peor y pueden absorber con dificultad incluso cuando hay agua abundante. La textura del suelo, su estructura, la materia orgánica y la cobertura superficial influyen en cuánto agua se almacena y con qué facilidad se extrae.
6. Sequía, continuidad hidráulica y cavitación
Cuando la demanda de la atmósfera supera durante demasiado tiempo la capacidad de reposición, cae el contenido de agua de los tejidos y puede disminuir el turgor. Las hojas se marchitan, algunas especies reducen su superficie foliar o dejan caer hojas, y el crecimiento se frena. La respuesta depende de la especie, su edad, el tipo de raíz, el suelo y la duración e intensidad del déficit. Una marchitez de mediodía puede ser temporal y recuperarse al bajar la demanda; una marchitez persistente, junto con sustrato seco o raíces dañadas, requiere atención.
La columna del xilema está sometida a tensión y puede romperse localmente si se forman burbujas de gas o si una burbuja ya presente se expande: esto se conoce como cavitación y puede bloquear parte del conducto, fenómeno asociado a la embolia. Las plantas disponen de muchas rutas paralelas y estrategias para limitar daños, pero una embolia severa puede reducir la conductividad hidráulica. No conviene traducirlo como “la planta tiene aire en las venas y se cura al regarla”: la reparación varía entre especies y condiciones, y no siempre se revierte rápidamente. Evitar déficits extremos y cuidar raíces y suelo es más sensato que confiar en una recuperación instantánea.
7. Consejos prácticos para el jardín
- Riega según humedad real del suelo y necesidades de la especie, no solo por calendario. Comprueba la zona de raíces; la superficie puede estar seca mientras abajo sigue húmedo, o al contrario.
- Cuando convenga, aplica el agua despacio y de forma que alcance el volumen radicular. Un riego superficial frecuente puede favorecer raíces someras y evaporación; la frecuencia adecuada depende del suelo, la planta y la estación.
- Asegura drenaje en macetas y parterres. Un recipiente con agua retenida puede asfixiar raíces; más agua no siempre significa mayor absorción.
- La cobertura orgánica reduce la evaporación del suelo y suaviza cambios de temperatura. Mantén el acolchado separado del cuello del tronco y no entierres la base de las plantas.
- En olas de calor o viento seco, revisa especialmente macetas, plantas recién plantadas y ejemplares con raíces alteradas. Evita podas fuertes o abonados innecesarios cuando la planta está sometida a estrés hídrico.
- Interpreta juntos el aspecto de la planta, la humedad del suelo, el drenaje y el tiempo reciente. Síntomas parecidos pueden deberse a exceso de agua, salinidad, daños radicales o enfermedad, no solo a falta de riego.
8. Xilema no es floema
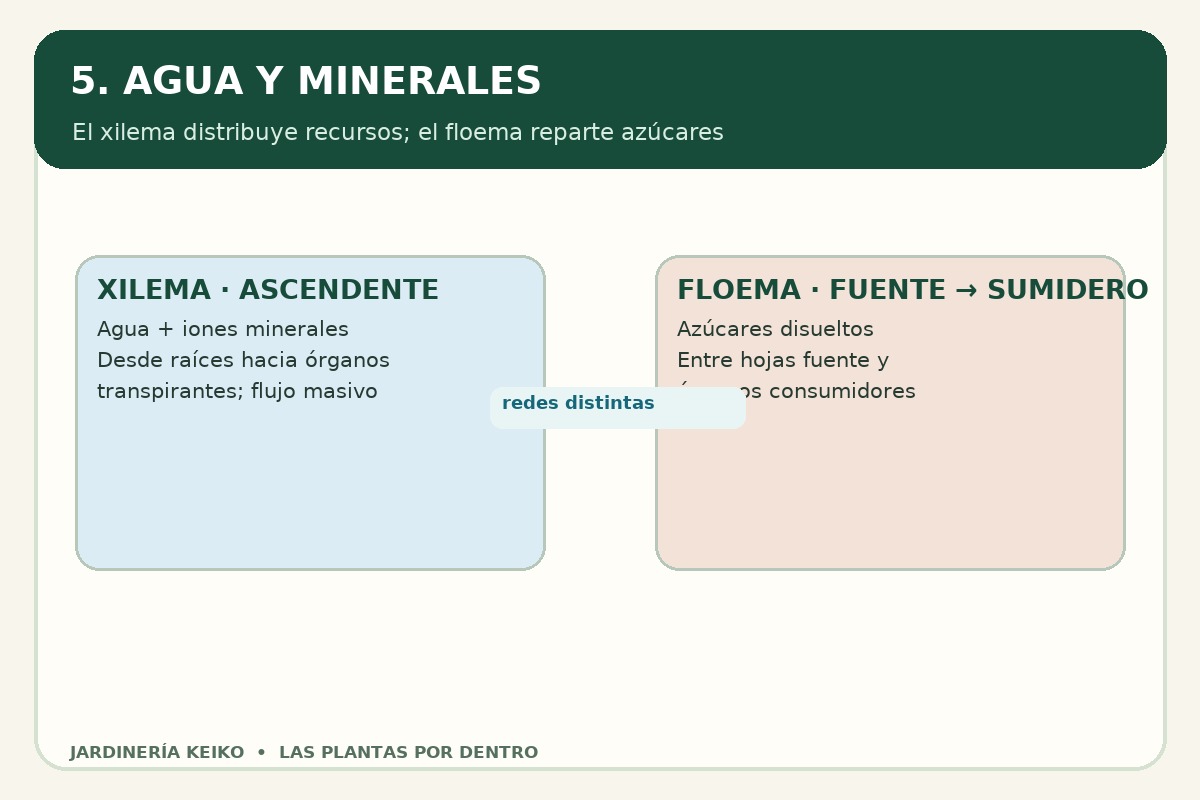
El xilema conduce principalmente agua y minerales desde las raíces hacia hojas y otros órganos, impulsado en gran medida por la transpiración. El floema transporta azúcares y otras sustancias orgánicas desde órganos fuente —a menudo hojas maduras que producen azúcares— hacia órganos sumidero que los consumen o almacenan, como raíces en crecimiento, frutos y brotes. El transporte floemático se organiza por diferencias de presión generadas al cargar y descargar solutos y puede dirigirse de forma distinta en distintas partes de la planta; no es simplemente el mismo flujo de agua subiendo por otro tubo. Ambos tejidos forman redes coordinadas, pero cumplen funciones y mecanismos diferentes.
Para recordar y seguir
El agua avanza por un continuo suelo-raíz-xilema-hoja-atmósfera siguiendo gradientes de potencial hídrico. Los pelos radicales amplían el contacto con el suelo; las rutas celulares y las paredes conducen el agua hacia el xilema; la evaporación foliar crea tensión, y la cohesión de las moléculas ayuda a transmitirla. Los estomas regulan el compromiso entre conservar agua y captar CO₂. Comprender esta cadena permite ajustar riego, drenaje y cuidados a la demanda real, sin asumir que una planta marchita siempre necesita más agua.
En el capítulo 12 nos centraremos en la nutrición mineral: qué elementos necesita la planta, cómo los incorpora y qué pistas ofrecen las carencias y los excesos en hojas y crecimiento.

 C. León Felipe, 7A, 1Izd
 633623913